Alergología - Parcial 1 - 03 - Tema 3 Inmunidad contra Helmintos
Tema 3 — Inmunidad contra Helmintos
(Clase 2 de febrero — bloque extenso)
Historia y generalidades
-
1930, África (Taliaferro, Sales y Chandler): presencia de eosinofilia periférica e intestinal.
-
1970 (Ogilvie y Jarret): niveles elevados de IgE y la importancia de las células T para la expulsión del nematodo del tracto GI (T. spiralis).
-
Décadas 1980-1990: la IgG1 (Nematospiroides debius) brinda protección, pero no es necesaria la producción de anticuerpos en todos los helmintos (T. muris).
-
Los helmintos cambian su antigenicidad en cada muda (4 estadios larvarios L1-L4).
-
Vías de entrada: ingesta (Trichuris, Ascaris — huevos; Trichinella spiralis — L1) o penetración de piel (Necator americanus — L3).
-
La infección ocurre por bajas dosis repetidas; por lo general el parásito no se multiplica en el hospedero (excepto T. spiralis).
-
Respuesta clásica: Th2 → IL-4, IL-5, IL-9, IL-10, IL-13; isotipos IgE, IgG1, IgG4.
-
La inflamación tipo 2 está diseñada fisiológicamente para expulsar organismos grandes que no pueden fagocitarse, especialmente helmintos adheridos a la mucosa intestinal.
-
Los mecanismos de expulsión incluyen producción abundante de moco, diarrea como mecanismo de arrastre, lesión química del parásito y aumento de la contracción del músculo liso/peristalsis.
-
Cuando esta misma respuesta se dirige contra sustancias inocuas, como pólenes, se convierte en inflamación alérgica; el órgano de exposición determina si predomina rinitis, asma u otra manifestación.
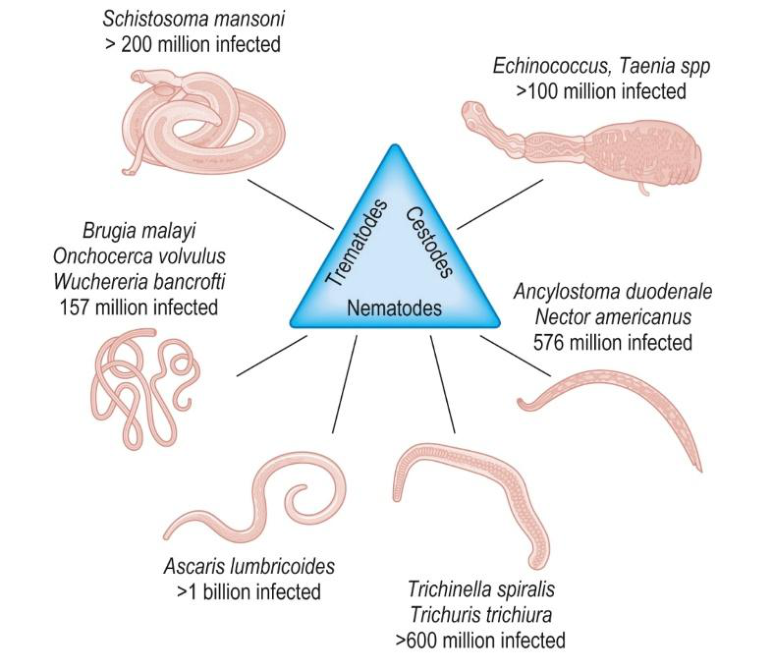
Clasificación taxonómica principal de los helmintos (Nematodos, Trematodos y Cestodos) e impacto epidemiológico global según el número estimado de personas infectadas
Barreras de moco — Tabla clave
| Molécula | Producida por | Función |
|---|---|---|
| Muc2 | Células caliciformes (vía IL-13) | Acelera la expulsión del nematodo |
| Muc5AC | Bajo control de IL-13 | Afecta la viabilidad de T. muris (no degradable por sus secreciones, a diferencia de Muc2) |
| RELM-β | Células epiteliales | Interfiere con la alimentación del parásito ("lo embolsa") |
| IL-9 (Th9 principalmente) | — | Contracción muscular intestinal |
| Anfiregulina | ILC2 | Renovación de células epiteliales |
Células linfoides innatas tipo 2 (ILC2)
-
Gen maestro: RORα. Producen IL-5, IL-13, IL-4, IL-9, GM-CSF, anfiregulina.
-
Sobreviven gracias a IL-9 (factor de supervivencia).
-
Expresan MHC-II → actúan como CPA.
-
IL-1β (por infección de H. polygyrus bakeri) → disminuye ILC2 → mecanismo de evasión del parásito.
-
TSLP induce ILC2 vía células dendríticas en T. muris (no requerido en N. brasiliensis).
-
IL-25 e IL-33 activan "nuocitos"; solo protegen en inmunocompetentes (no en SCID).
-
En las barreras GI y pulmón, la supervivencia de ILC2 depende de IL-9. Act1 en intestino y factor trébol 2 en pulmón inician la respuesta de ILC2.
-
ILC2 expresan MHC-II y actúan como CPA para LT CD4+, aumentando la producción de IL-13 y la eliminación de nematodos (N. brasiliensis).
-
TSLP permite a las células dendríticas inducir respuesta Th2 (T. muris); en N. brasiliensis, TSLP no es requerido. En ausencia de TSLP en T. muris, neutralizando IFN-γ, se observa reversión de la resistencia. TSLP opera indirectamente regulando a la baja Th1/Th17.
-
El daño epitelial causado por el parásito y sus proteasas libera alarminas epiteliales —principalmente IL-25, IL-33 y TSLP— que activan tempranamente a ILC2 y células dendríticas. Después, la respuesta se amplifica mediante Th2, IL-4, IL-5 e IL-13, con producción de IgE, eosinofilia, moco y contracción del músculo liso.
-
Las alarminas ocupan una posición temprana y ascendente en la cascada inflamatoria; por ello, su bloqueo puede reducir varias ramas efectoras simultáneamente. El bloqueo de IL-5 o de la vía IL-4/IL-13 actúa en niveles más descendentes y específicos.
-
Los linfocitos T γδ constituyen una población particular frecuente en superficies epiteliales. Pueden responder con rapidez a señales de daño y contribuir a la amplificación o regulación de la inmunidad de barrera, según el tejido y el contexto infeccioso.
-
Célula dendrítica CD103+CD11b+ y CD103+CD11b-, e infrecuente CD103-CD11b+. IRF4 es importante en la inducción de la respuesta Th2 (N. brasiliensis).
-
Inducción de LT FoxP3+ (H. polygyrus bakeri); movimiento rápido de CD103+ mediante CCL5 y CCL20 (T. muris). Basófilos e ILC tienen un papel importante como CPA en infecciones por nematodos.
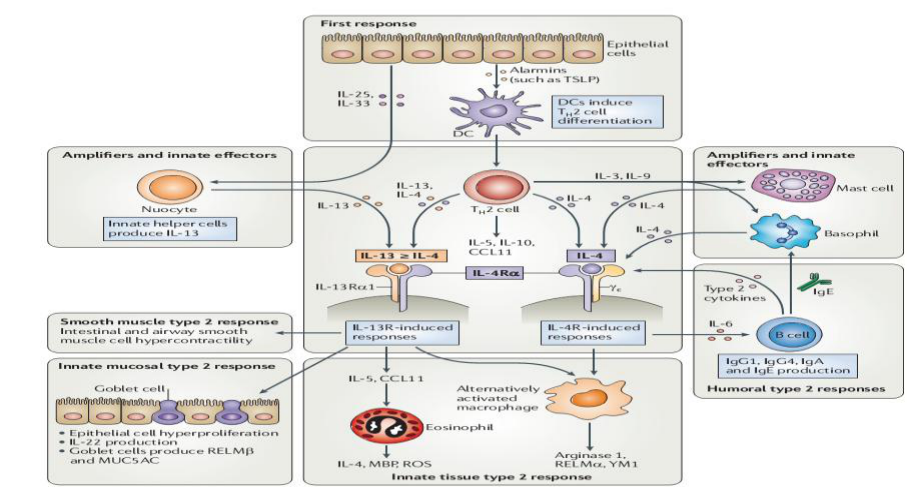
Cascada celular y molecular integrada de la respuesta inmune tipo 2 frente a helmintos y alérgenos.
Macrófagos M2 (activación alternativa) — Funciones
-
Efecto antiparasitario
-
Regulación inmune
-
Reparación de tejido
-
CPA
-
NO activan Th1
-
La IL-4 y la IL-13 inducen el programa M2 principalmente mediante STAT6, con participación de reguladores metabólicos como PPARγ y PGC-1β.
-
A diferencia del macrófago M1, que depende en gran medida de la glucólisis, el M2 conserva un ciclo de los ácidos tricarboxílicos más continuo y utiliza preferentemente fosforilación oxidativa y oxidación de ácidos grasos.
-
En la cadena respiratoria, los electrones pasan por complejos mitocondriales; el oxígeno es el aceptor final de electrones y se reduce a agua. El bombeo de protones genera un gradiente que impulsa la ATP sintasa para producir ATP.
-
La β-oxidación aporta acetil-CoA al ciclo de Krebs, mientras que el metabolismo de glutamina puede aportar α-cetoglutarato; ambos sostienen el programa oxidativo y reparador del macrófago M2.
-
La arginasa 1 desvía la arginina hacia ornitina, poliaminas y prolina, lo que favorece proliferación celular, síntesis de colágeno y depósito de matriz extracelular. Este mecanismo ayuda a reparar y encapsular el daño, pero si es excesivo puede contribuir a fibrosis.
-
Macrófagos M2 involucrados en atrapar estados larvarios (H. polygyrus bakeri) en infecciones secundarias.
-
Los linfocitos CD4+ migran al intestino para mediar protección y contribuyen al fenotipo de citocinas de Th2.
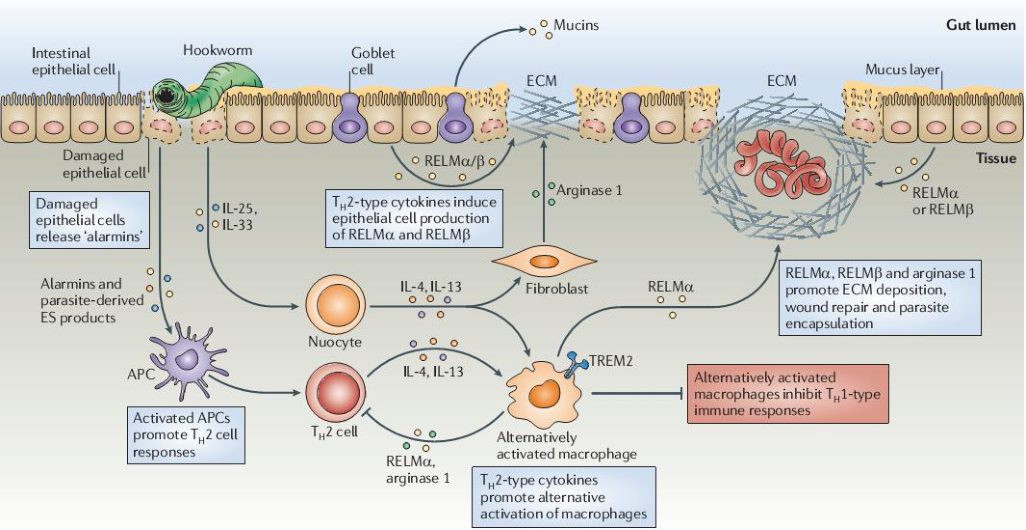
Mecanismos inmunes de barrera, activación alternativa de macrófagos (M2) y reparación tisular/encapsulamiento frente a la infección por helmintos (Hookworm).
Otros datos importantes
-
mMCP1 (proteasa 1 de mastocitos de ratón): protege contra H. polygyrus bakeri y T. spiralis; su producción aumenta con IgE.
-
Células cebadas: papel importante contra H. polygyrus bakeri y T. spiralis, dependen de la producción de mMCP1. La IgE incrementa la producción de mMCP1 y, en piel, protege de la invasión.
-
Eosinófilos: distintivos de infección por helmintos, migran vía leucotrienos. Liberan proteína básica mayor, proteína catiónica eosinofílica, peroxidasa eosinofílica, enzimas y especies reactivas de oxígeno; estos mediadores dañan al parásito, pero también pueden lesionar el tejido del huésped.
-
Neutrófilos: perfil dependiente de IL-13/arginasa para eliminar larvas pulmonares (N. brasiliensis) mediante el mecanismo dependiente de arginasa.
-
TGF-β: disminuye Th2, ayuda a la resolución/fibrosis.
-
Evasión inmune crónica: inducción de Treg, TGF-β → IL-10 → SOCS3 (supresor de señalización de citocinas) → el parásito evade la respuesta Th2. IL-6 se involucra en Treg con capacidades distintas a las Treg FoxP3 clásicas (H. polygyrus bakeri).
-
Isotipos de anticuerpos protectores: IgE, IgG1, IgG4.
Consecuencias de la inmunomodulación por helmintos
-
En infecciones crónicas, la inducción de Treg, IL-10, TGF-β y macrófagos M2 limita el daño tisular, pero también crea un estado de tolerancia que favorece la permanencia del parásito.
-
El predominio tipo 2 puede antagonizar los ejes IL-12/IFN-γ/Th1 y la activación clásica M1. En consecuencia, puede disminuir la capacidad de controlar algunos microorganismos intracelulares y modificar mecanismos como la autofagia y la actividad microbicida del macrófago.
-
La coinfección por helmintos puede asociarse, según el parásito y el huésped, con mayor carga viral, peor depuración de ciertas bacterias intracelulares o una respuesta menos intensa a algunas vacunas. No constituye un efecto universal y depende del grado de inmunomodulación crónica.
-
La inmunorregulación inducida por helmintos también puede atenuar ciertos mecanismos de alergia o autoinmunidad; sin embargo, esta protección es variable y no debe interpretarse como beneficio clínico constante.
-
Los tratamientos que silencian de manera prolongada las alarminas o las vías tipo 2 deben valorarse considerando exposición epidemiológica, viajes y riesgo de parasitosis, porque las mismas rutas bloqueadas participan en la defensa fisiológica contra helmintos.
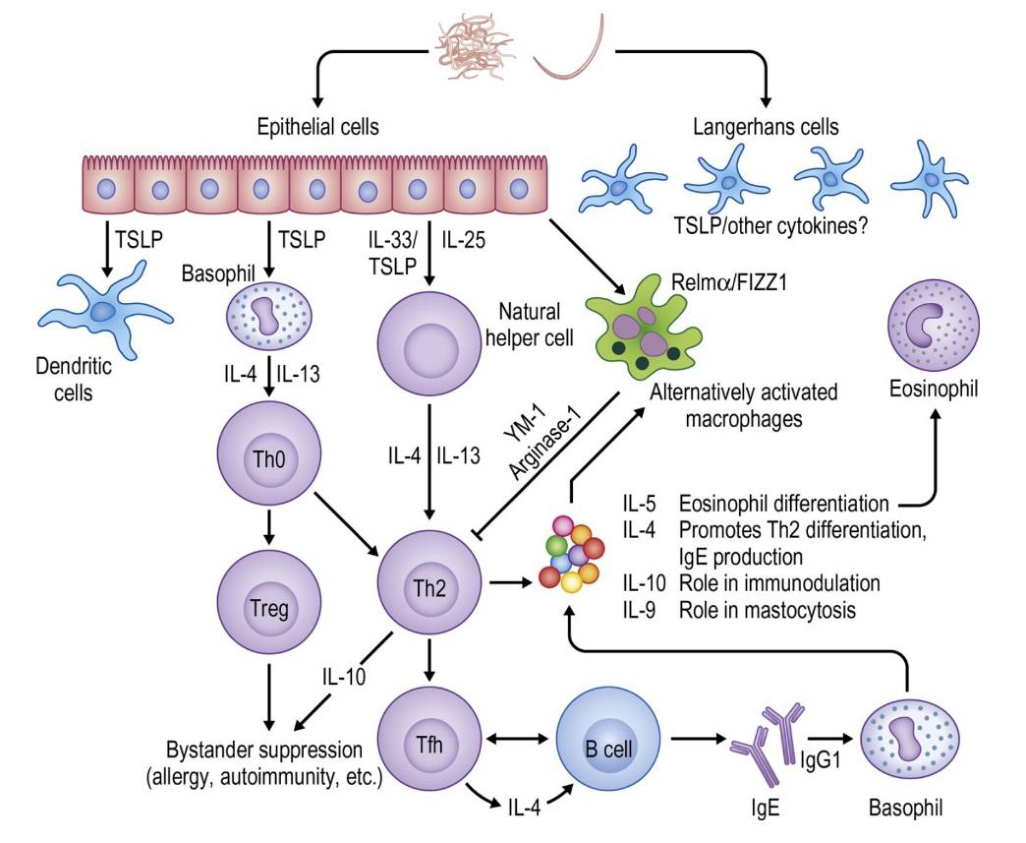
Inducción de la respuesta tipo 2, regulación por células de Langerhans/Treg y activación alternativa de macrófagos ante la exposición a helmintos.